
Mykoplazmy – Mycoplasma Nowak 1929 (niem. Mykoplasmen, ang. mycoplasmas, fr. mycoplasmes) są najmniejszymi organizmami zdolnymi do samodzielnego rozmnażania i jedynymi bakteriami, u których sterole pobrane z zewnątrz są warunkiem wzrostu. Przez pół wieku brano je za wirusy i to nieporozumienie zostawiło trwały ślad. W podręcznikach fitoterapii, także w tych wydanych niedawno, zakażeń mykoplazmowych nie ma prawie wcale, choć odpowiadają one za znaczną część zapaleń płuc u dzieci w wieku szkolnym i za znaczną część nierzeżączkowych zapaleń cewki moczowej, których nie wywołuje Chlamydia trachomatis. Omawiam je na wykładach od lat, swego czasu prowadziłem nad nimi badania z uwagi na potrzebę ze strony hodowców zwierząt gospodarskich, bowiem stanowią wciąż poważny problem.
Mykoplazmy należą do klasy Mollicutes (od łac. mollis, „miękki”, i cutis, „skóra”), rzędu Mycoplasmatales i rodziny Mycoplasmataceae. W starszym piśmiennictwie występują jako PPLO (ang. pleuropneumonia-like organisms, niem. Pleuropneumonie-ähnliche Organismen), ponieważ pierwszy poznany przedstawiciel wywoływał zarazę płucną bydła.
Biologia i budowa
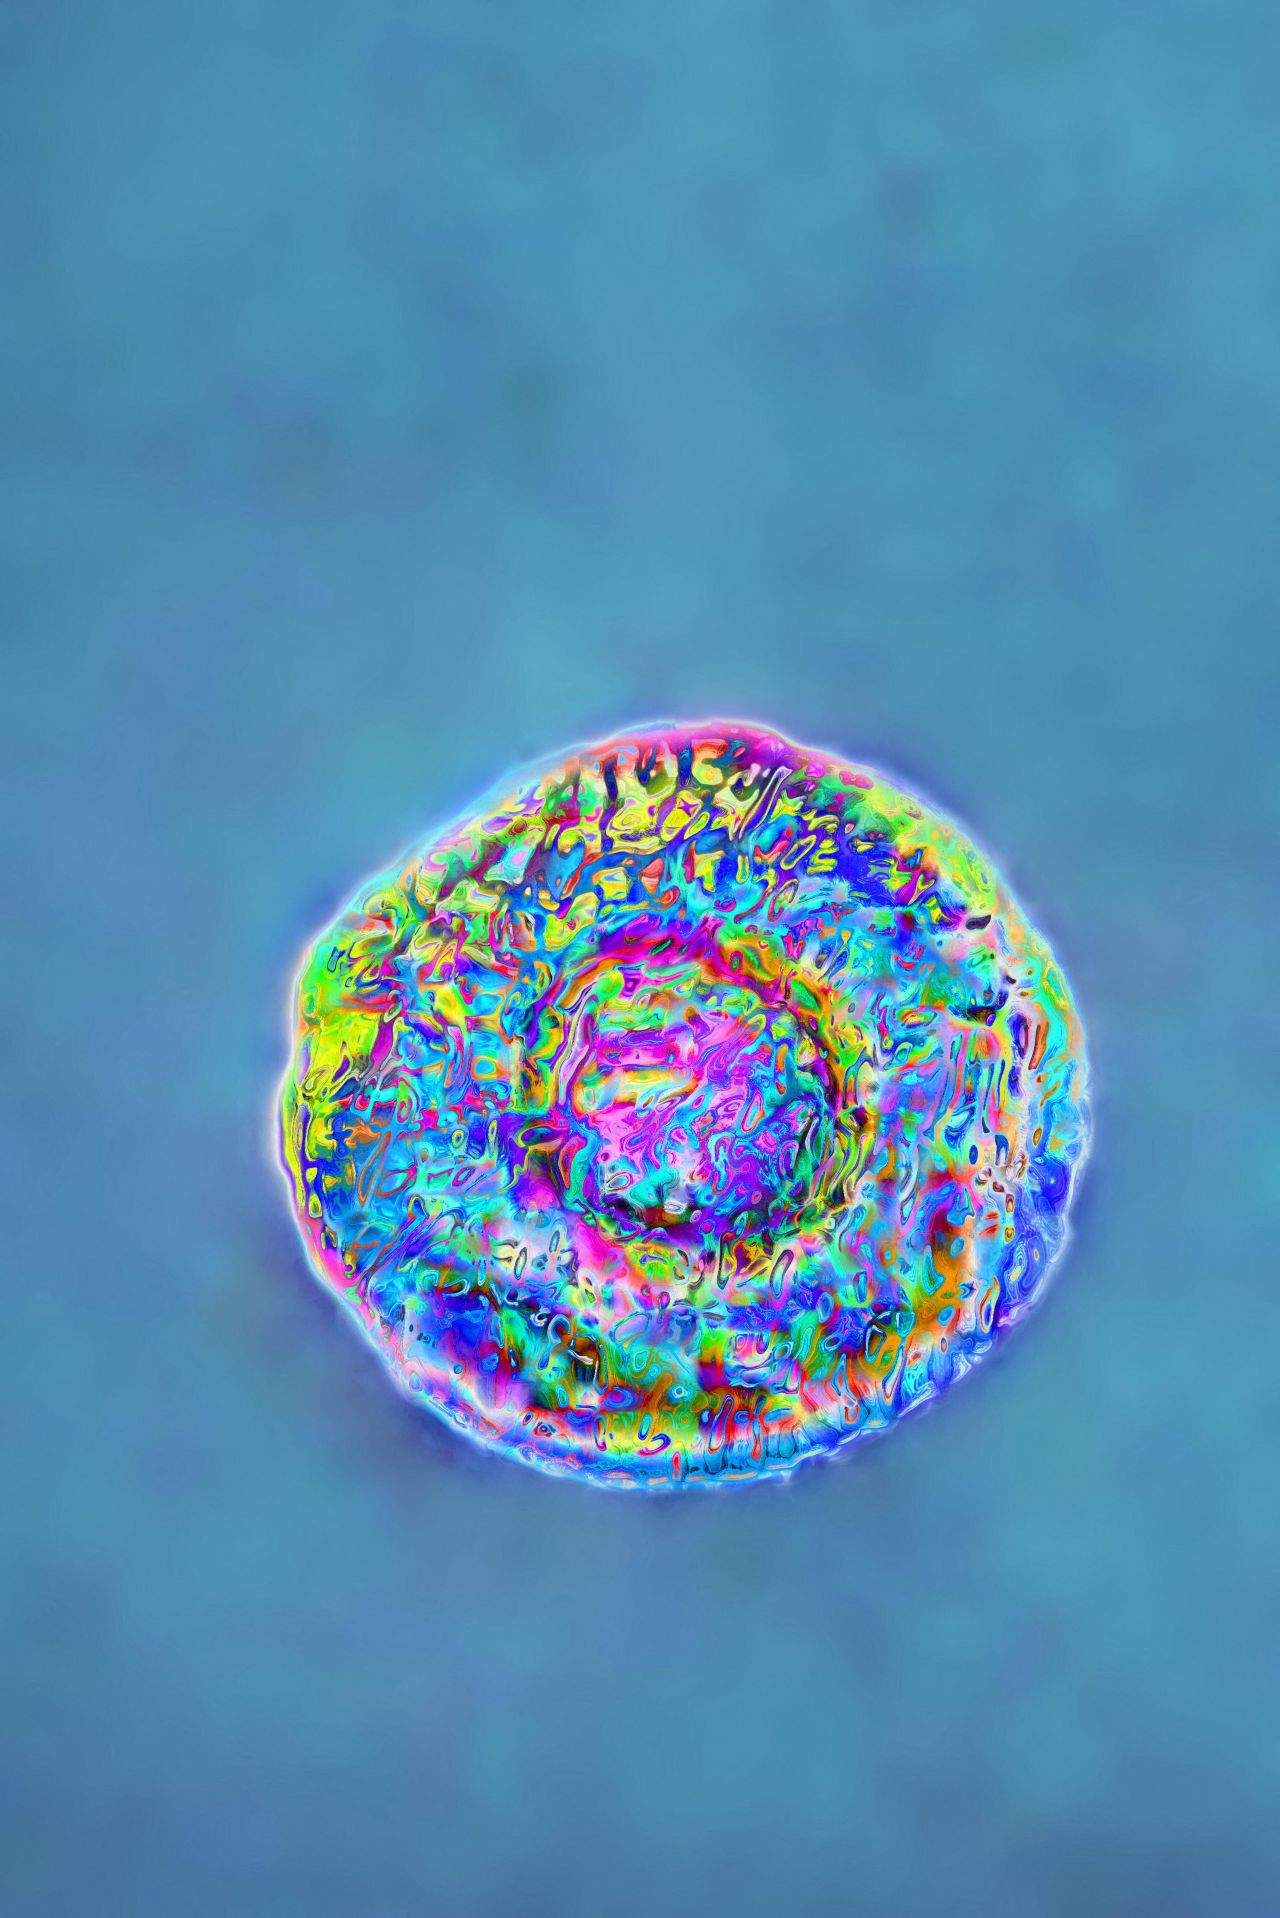
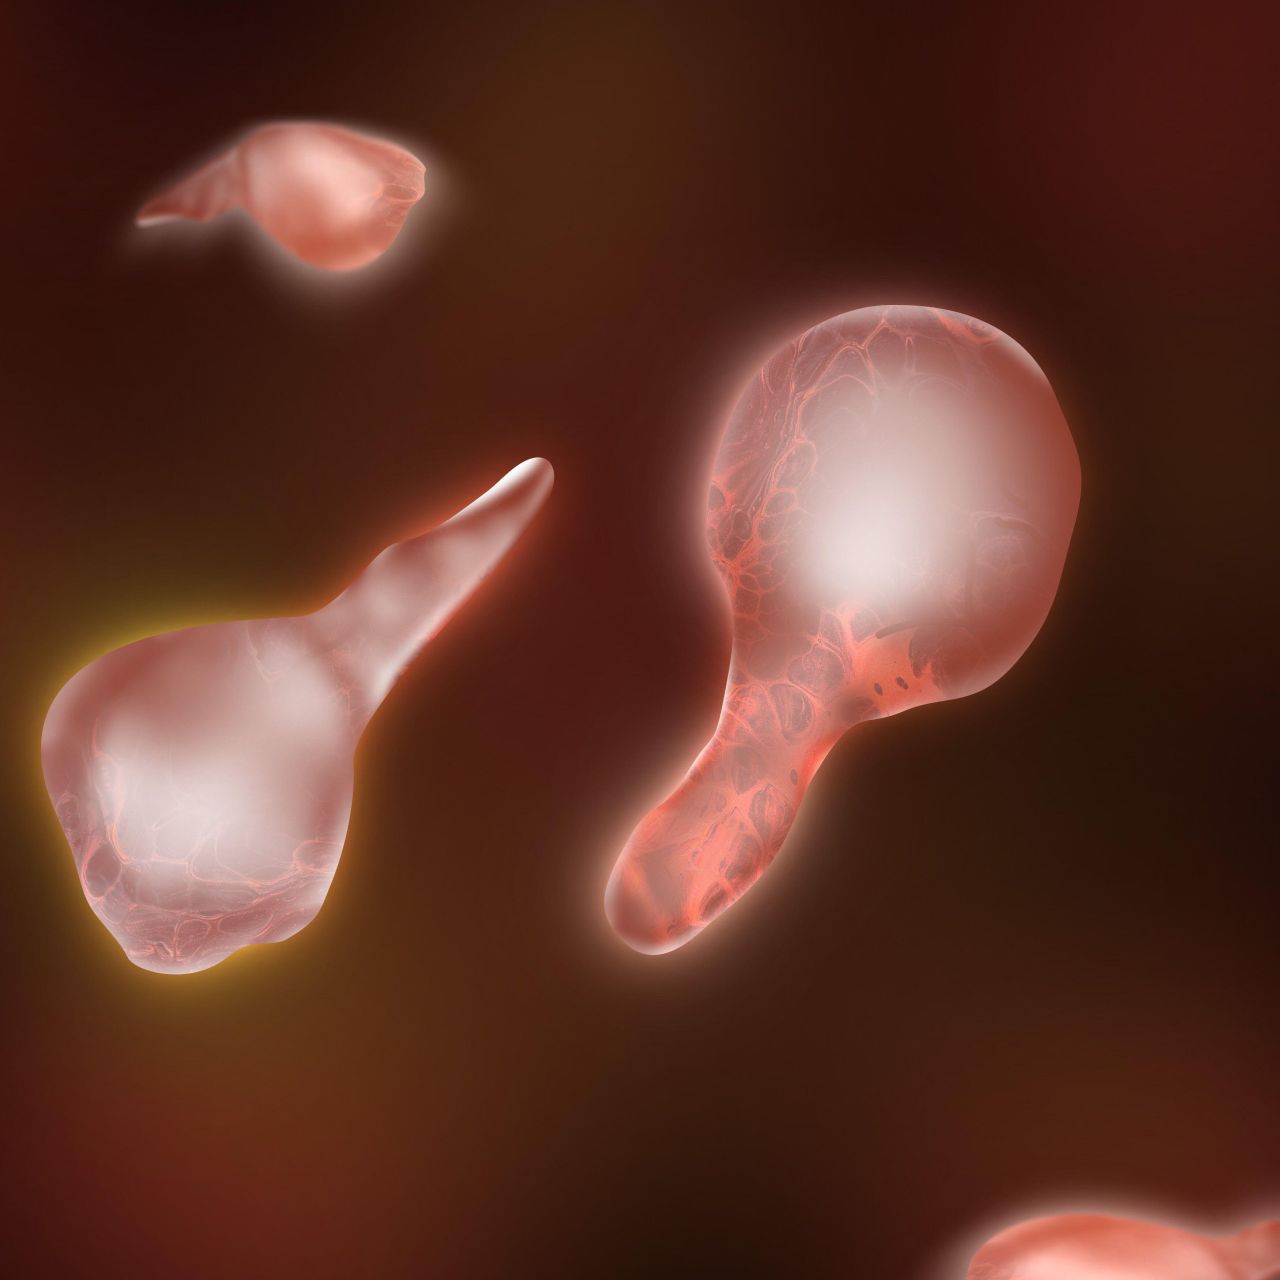
Komórki mykoplazm są drobne, mają 0,2–0,8 µm średnicy i przechodzą przez filtry bakteryjne o porach 0,45 µm, co przez dziesięciolecia utrzymywało je w kategorii zarazków przesączalnych, czyli wirusów. Nie mają ściany komórkowej i nie syntetyzują peptydoglikanu, dlatego nie barwią się metodą Grama, są pleomorficzne (formy kuliste, gruszkowate, nitkowate, rozgałęzione), a na podłożach stałych tworzą drobne kolonie o wyglądzie sadzonego jajka (ang. fried-egg colonies), wrastające środkiem w agar, co obserwowałem podczas swoich badań na uczelni w Krośnie. Brak ściany tłumaczy pełną, naturalną oporność na antybiotyki beta-laktamowe i glikopeptydy, a zarazem dużą wrażliwość na wysychanie, detergenty, ogrzewanie i zwykłe środki dezynfekcyjne. Właściwie w moich hodowlach wszystko im szkodziło, nawet rozcieńczone Tweeny, co utrudniało badania przy rozcieńczaniu substancji fitoncydowych lipofilnych. Ta sama cecha, która czyni mykoplazmy nieczułymi na penicyliny, otwiera je na działanie związków lipofilnych i powierzchniowo czynnych, i od tego punktu zaczyna się cała fitoterapia mykoplazmoz. W moich hodowlach szkodziła im Quillaja, Saponaria, Dioscorea, Polygonatum, Agave, czy Lysimachia.
Błona cytoplazmatyczna mykoplazm zawiera sterole, głównie cholesterol pobierany z surowicy gospodarza lub z podłoża, stąd hodowla wymaga 10–20% surowicy końskiej. Sterole usztywniają błonę i czynią ją wrażliwą na digitoninę, co wykorzystuje się w teście odróżniającym rodzaj Mycoplasma od niewymagającego steroli rodzaju Acholeplasma. Genom jest skrajnie zredukowany. U Mycoplasma genitalium liczy 580 070 par zasad i około 470 genów (Fraser i in., 1995), a u Mycoplasma pneumoniae M129 816 394 par zasad, przy zawartości GC 40% i 677 ramkach odczytu (Himmelreich i in., 1996). Kodon UGA, w kodzie uniwersalnym oznaczający stop, u mykoplazm koduje tryptofan, co jako pierwsi wykazali Fumiaki Yamao, Akira Muto i współpracownicy w 1985 roku na Mycoplasma capricolum, znajdując kodony UGA w ramkach odczytu białek rybosomowych S3 i L16 oraz tRNA tryptofanowy z antykodonem 5’-UCA-3’.
Komórki nie syntetyzują aminokwasów, puryn, pirymidyn ani kwasów tłuszczowych. Energię czerpią z fermentacji glukozy (Mycoplasma pneumoniae, Mycoplasma fermentans) lub z hydrolizy argininy (Mycoplasma hominis, Mycoplasma arthritidis), a ureaplazmy z rozkładu mocznika, co jest podstawą ich różnicowania na pożywkach wskaźnikowych. Pasożytnictwo jest wpisane w ten metabolizm. Mykoplazmy żyją na powierzchni nabłonków i czerpią od gospodarza gotowe nukleotydy, lipidy, sterole i aminokwasy, a poza gospodarzem w środowisku się ich nie spotyka.
Gatunki chorobotwórcze dla dróg oddechowych i moczowo-płciowych wykształciły organellę przylegania (ang. attachment organelle), biegunowy wyrostek z własnym cytoszkieletem i adhezynami. U Mycoplasma pneumoniae główną adhezyną jest białko P1 o masie około 170 kDa, wspomagane przez P30 i białka HMW1–HMW3. Wiąże ono sialilowane oligosacharydy nabłonka rzęskowego, po czym komórka ślizga się po powierzchni (ang. gliding motility). Przylegająca mykoplazma wydziela nadtlenek wodoru i anionorodnik ponadtlenkowy, powstające przy utlenianiu glicerolu, i uszkadza nimi rzęski oraz nabłonek. Wydziela też białko MPN372 o masie 68 kDa, które ADP-rybozyluje białka gospodarza i wywołuje wakuolizację komórek (Kannan i Baseman, 2006); nazwę toksyna CARDS (ang. Community-Acquired Respiratory Distress Syndrome toxin) wprowadzili ci sami autorzy w pracach późniejszych. Jest to jedyna znana bakteryjna toksyna łącząca aktywność ADP-rybozylotransferazy z działaniem wakuolizującym.
Mykoplazmy występują u człowieka, ssaków, ptaków, gadów i ryb, a pokrewne spiroplazmy i fitoplazmy u owadów i roślin. U człowieka opisano kilkanaście gatunków. Komensale jamy ustnej i gardła to Mycoplasma salivarium, Mycoplasma orale i Mycoplasma buccale, a dróg moczowo-płciowych Mycoplasma hominis, Mycoplasma genitalium, Mycoplasma fermentans, Mycoplasma penetrans, Ureaplasma urealyticum i Ureaplasma parvum.
Osobnym i mocno niedocenianym problemem jest zanieczyszczenie hodowli komórkowych. Zakażonych jest 15–35% linii w laboratoriach, a pięć gatunków odpowiada w materiale tych autorów za 91% przypadków: Mycoplasma fermentans 47%, Mycoplasma hyorhinis 19%, Mycoplasma orale 10%, Mycoplasma arginini 9% i Acholeplasma laidlawii 6%, przy Mycoplasma hominis 3% (Uphoff i Drexler, 2002; Drexler i Uphoff, 2002). Znaczna część prac z zakresu biologii komórki, w tym prac oznaczających aktywność wyciągów roślinnych na liniach komórkowych, powstała na materiale zakażonym mykoplazmami, o czym zwykle się nie wspomina.
Odkrycie i historia
Zarazę płucną bydła (łac. pleuropneumonia contagiosa bovum, fr. péripneumonie contagieuse des bovidés, niem. Lungenseuche des Rindes) znano od XVIII wieku i przez cały XIX wiek była plagą europejskiej hodowli, wobec której medycyna weterynaryjna nie miała nic poza ubojem i kwarantanną. Zarazka nikt nie potrafił wyhodować. Dokonali tego Edmond Nocard (1850–1903) i Émile Roux (1853–1933), przy współpracy Amédée Borrela, Alessandra Salimbeniego i Dujardin-Beaumetza, ogłaszając w 1898 roku pracę Le microbe de la péripneumonie w Annales de l’Institut Pasteur. Metoda pokazuje, jak daleko trzeba było odejść od zwykłej bakteriologii. Bulion zaszczepiony surowicą chorego bydła zamykano w woreczkach kolodionowych i wszczepiano do otrzewnej królika, gdzie po piętnastu do dwudziestu dniach pojawiał się opalizujący płyn z rosnącym zarazkiem. Technikę woreczków kolodionowych przeniesiono z wcześniejszych prac Miecznikowa, Roux i Salimbeniego nad toksyną cholery. Zarazek przechodził przez filtry zatrzymujące bakterie, a później udało się go hodować także in vitro, w bulionie peptonowym Martina z dodatkiem surowicy krowiej lub króliczej.
Borrel, Dujardin-Beaumetz, Jeantet i Jouan nazwali go w 1910 roku Asterococcus mycoides; nazwa ta nie została jednak ważnie opublikowana w rozumieniu kodeksu nomenklatury bakterii i funkcjonuje dziś jako bazonim. Nazwę rodzajową Mycoplasma (od gr. mykes, „grzyb”, i plasma, „twór”, od nitkowatych, przypominających grzybnię form) wprowadził w 1929 roku Julian Ignacy Nowak (1865–1946) w pracy Morphologie, nature et cycle évolutif du microbe de la péripneumonie des bovidés, ogłoszonej w tych samych Annales de l’Institut Pasteur. Nowak, urodzony w Okocimiu pod Brzeskiem, był profesorem Uniwersytetu Jagiellońskiego, kierownikiem Katedry Weterynarii, rektorem UJ w latach 1921–1922, a od 31 lipca do 14 grudnia 1922 roku premierem Rzeczypospolitej. Nazwa rodzaju bakterii, która obrosła dziś tysiącami prac, jest więc dziełem polskiego uczonego i jest to jeden z tych faktów, o których w polskim piśmiennictwie mikrobiologicznym wspomina się zdumiewająco rzadko. Gatunek typowy rodzaju to Mycoplasma mycoides (Borrel i in. 1910) Freundt 1955.
Emmy Klieneberger-Nobel (1892–1985), bakteriolog z Lister Institute of Preventive Medicine w Londynie, opisała w 1935 roku formy L bakterii, nazwane tak od Lister Institute, a później wykazała, że PPLO są samodzielnymi drobnoustrojami, a nie bezściennymi wariantami zwykłych bakterii. Rozstrzygnięcie tego sporu zajęło jej ćwierć wieku i jest jednym z ładniejszych przykładów cierpliwości w mikrobiologii. Pierwszy szczep ludzki wyosobnili w czystej kulturze Louis Dienes (1885–1974) i Geoffrey Edsall (1908–1980) w 1937 roku, z wyciętego, ropiejącego gruczołu Bartholina. Szczep ten uważa się dziś za Mycoplasma hominis, choć źródłowego udokumentowania tego przypisania nie znalazłem.
W 1944 roku Monroe Davis Eaton (1904–1989), Gordon Meiklejohn i William van Herick przeszczepili zarazek pierwotnego atypowego zapalenia płuc z plwociny chorych bawełniakom, chomikom i zarodkom kurzym. Czynnik Eatona uchodził za wirusa przez siedemnaście lat, dopóki Barrie Marmion (1920–2014) i Gillian Goodburn nie wykazali w 1961 roku w Nature, że hamuje go organiczna sól złota, czynna wobec PPLO, a nieczynna wobec wirusów. Naturę drobnoustroju rozpoznano więc metodą farmakologiczną, a nie mikroskopową, i bardzo mi się ten sposób rozumowania podoba. Robert Chanock (1924–2010), Leonard Hayflick (1928–2024) i Michael Barile wyhodowali czynnik Eatona w 1962 roku na bezkomórkowym podłożu agarowym z surowicą końską i wyciągiem drożdżowym, które weszło do piśmiennictwa jako podłoże Hayflicka. Nazwę Mycoplasma pneumoniae opublikowali w 1963 roku Norman Somerson, David Taylor-Robinson i Robert Chanock w pracy o wytwarzaniu hemolizyny jako cechy ułatwiającej identyfikację czynnika Eatona, i tym trzem nazwiskom przysługuje autorstwo nomenklatoryczne, mimo że w popularnym piśmiennictwie samo wymyślenie nazwy przypisuje się Hayflickowi.
Joseph Tully, David Taylor-Robinson (ur. 1931), Roger Cole i David Rose wyosobnili w 1981 roku z cewki moczowej mężczyzn z nierzeżączkowym zapaleniem cewki nowy gatunek, hodując go z wymazów u dwóch z trzynastu chorych. Nazwę Mycoplasma genitalium opublikowali formalnie dopiero w 1983 roku, z udziałem Josepha Bovégo, i to ta data, nie rok 1981, jest datą autorstwa nazwy. Genom tego gatunku, odczytany przez zespół Claire Fraser w 1995 roku, był drugim w historii pełnym genomem bakteryjnym, po genomie Haemophilus influenzae Rd ogłoszonym przez Roberta Fleischmanna trzy miesiące wcześniej. Na mykoplazmach zespół Craiga Ventera zbudował w 2010 roku pierwszą komórkę kierowaną syntetycznym genomem, Mycoplasma mycoides JCVI-syn1.0, o genomie 1,08 mln par zasad przeszczepionym do komórki Mycoplasma capricolum (Gibson i in., 2010), a w 2016 roku komórkę minimalną JCVI-syn3.0 o genomie 531 tys. par zasad i 473 genach, z których 149 ma nieznaną funkcję (Hutchison i in., 2016). Nie jest przypadkiem, że pytanie o najmniejszy możliwy genom postawiono właśnie na mykoplazmach.
Spór o systematykę
Systematyka rodzaju pozostaje nierozstrzygnięta i jest to spór pouczający. Radhey Gupta i współpracownicy (2018) na podstawie filogenomiki rozbili rodzaj Mycoplasma na Mycoplasma sensu stricto (grupa mycoides), Mycoplasmoides (z Mycoplasmoides pneumoniae i Mycoplasmoides genitalium), Mycoplasmopsis, Metamycoplasma, Mesomycoplasma i Malacoplasma. Podkomisja do spraw Mollicutes działająca przy Międzynarodowym Komitecie Systematyki Prokariotów (ang. International Committee on Systematics of Prokaryotes, ICSP) zaleciła odrzucenie tych nazw, argumentując zamieszaniem, jakie wprowadzą w praktyce klinicznej (Balish i in., 2019). Nazwy zostały jednak ważnie opublikowane i baza LPSN (ang. List of Prokaryotic names with Standing in Nomenclature) wymienia dziś Mycoplasmoides pneumoniae (Somerson i in. 1963) Gupta i in. 2018 jako nazwę poprawną i zalecaną do stosowania w medycynie, a Mycoplasma pneumoniae jako jej synonim, do stosowania w medycynie niezalecany. Przy nazwie Mycoplasma trwa więc nie LPSN, lecz piśmiennictwo kliniczne, farmakopee i podręczniki, i tej praktyki się trzymam, podając nowe nazwy jako synonimy. Filogenomika rozstrzyga o pokrewieństwie, nie o tym, co pisać w rozpoznaniu.
Gatunki i zakażenia u człowieka
Mycoplasma pneumoniae jest przyczyną zapalenia tchawicy i oskrzeli oraz 10–40% pozaszpitalnych zapaleń płuc u dzieci w wieku szkolnym i młodych dorosłych. Zakażenie szerzy się drogą kropelkową, okres wylęgania wynosi 1–3 tygodnie, a epidemie powracają co 3–7 lat. Przebieg jest zwykle podostry, co w piśmiennictwie anglosaskim nazwano chodzącym zapaleniem płuc (ang. walking pneumonia): suchy, napadowy kaszel, stan podgorączkowy i złe samopoczucie, przy skąpych zmianach osłuchowych i rozległych zacienieniach śródmiąższowych w obrazie radiologicznym. Rozbieżność między tym, co słychać, a tym, co widać na zdjęciu, jest cechą rozpoznawczą pewniejszą niż niejeden test serologiczny.
Powikłania pozapłucne dotyczą do 25% chorych i one stanowią rzeczywiste niebezpieczeństwo. Należą do nich niedokrwistość hemolityczna z zimnymi aglutyninami, rumień wielopostaciowy oraz osobno wyodrębniona wysypka z zapaleniem błon śluzowych (ang. Mycoplasma-induced rash and mucositis, MIRM), zapalenie mózgu, zespół Guillaina-Barrégo, zapalenie mięśnia sercowego, stawów i kłębuszków nerkowych (Waites i in., 2017). Szczepy dzieli się na typy 1 i 2 według wariantu genu adhezyny P1.
Po trzech latach ciszy w czasie pandemii COVID-19 obserwujemy od jesieni 2023 roku opóźniony nawrót epidemii (Meyer Sauteur i Beeton, 2024). W Danii liczba zakażeń u dzieci w sezonie 2023/2024 była 2,9 razy, a zapalenia skóry i błon śluzowych 5,3 razy wyższa niż przed pandemią (Dungu i in., 2024). Nadzór ogólnoświatowy obejmujący 65 ośrodków w 29 krajach wykazał, że nawrót przybrał charakter epidemiczny jednocześnie w 10 krajach w 40. tygodniu 2023 roku, przy czym ciężkość przebiegu i śmiertelność (0,11% zgłoszonych zakażeń) nie różniły się od okresu przed pandemią (ESGMAC MAPS study group, 2025). Autorzy wiążą opóźnienie nawrotu z długim, trzytygodniowym czasem generacji zakażenia, wynikającym z długiego okresu wylęgania, i to wyjaśnienie wydaje mi się rzetelniejsze niż rozmaite spekulacje o osłabieniu odporności populacyjnej.
Oporność na makrolidy wynika z mutacji punktowych w domenie V genu 23S rRNA, głównie A2063G, rzadziej A2064G. W tym samym nadzorze odsetek szczepów opornych wyniósł 2,02% w Europie i 71,22% w Azji, a wartości te nie zmieniły się w porównaniu z okresem przed pandemią. Praktyczny wniosek dla Polski jest taki, że makrolid pozostaje u nas lekiem pierwszego rzutu, a doniesienia o masowej oporności dotyczą Azji Wschodniej.
Mycoplasma genitalium wywołuje 10–35% niechlamydiowych nierzeżączkowych zapaleń cewki moczowej u mężczyzn, u kobiet zapalenie szyjki macicy i 10–25% zapaleń narządów miednicy mniejszej, sprzyja niepłodności jajowodowej i porodom przedwczesnym. Rozpoznanie jest możliwe tylko metodami amplifikacji kwasów nukleinowych i powinno obejmować wykrywanie mutacji oporności na makrolidy, bo bez tego leczenie jest grą w ciemno. W metaanalizie Dorothy Machalek i współpracowników (2020) odsetek szczepów opornych na makrolidy wzrósł z 10,0% przed 2010 rokiem do 51,4% w latach 2016–2017, oporność na fluorochinolony (mutacje genu parC: S83R, S83I, D87N lub D87Y) wynosiła 7,7%, a oporność na obie grupy jednocześnie 2,8%. Tempo narastania oporności w tym gatunku jest najszybsze, jakie znam wśród bakterii przenoszonych drogą płciową.
Mycoplasma hominis kolonizuje drogi rodne 20–50% kobiet aktywnych płciowo, towarzyszy waginozie bakteryjnej, gorączce połogowej i zapaleniu błon płodowych, a u chorych po przeszczepach i z hipogammaglobulinemią wywołuje septyczne zapalenia stawów i ropnie. Jest naturalnie oporna na makrolidy 14- i 15-członowe (erytromycynę, azytromycynę), lecz wrażliwa na klindamycynę, tetracykliny i fluorochinolony, i jest to różnica, na którą trzeba uważać, bo ureaplazmy zachowują się odwrotnie.
Ureaplasma urealyticum i Ureaplasma parvum (dawne biowary T-960 i Parvo) odpowiadają za część zapaleń cewki, za zapalenie błon płodowych, poród przedwczesny i dysplazję oskrzelowo-płucną wcześniaków. Są wrażliwe na erytromycynę, a oporne na klindamycynę.
Mykoplazmy w weterynarii
W weterynarii znaczenie mają Mycoplasma mycoides subsp. mycoides (zaraza płucna bydła, choroba z listy Światowej Organizacji Zdrowia Zwierząt, ang. World Organisation for Animal Health, WOAH), Mycoplasma capricolum subsp. capripneumoniae (zaraza płucna kóz), Mycoplasma agalactiae (zakaźna bezmleczność owiec i kóz, z zapaleniem gruczołu mlekowego, stawów, spojówek i narządów płciowych oraz poronieniami), Mycoplasma bovis (zapalenia płuc, wymienia i stawów bydła), Mycoplasma hyopneumoniae (enzootyczne zapalenie płuc świń), Mycoplasma hyorhinis i Mycoplasma hyosynoviae (zapalenia błon surowiczych i stawów świń), Mycoplasma gallisepticum i Mycoplasma synoviae (przewlekła choroba układu oddechowego i zapalenie błon maziowych drobiu), Mycoplasma conjunctivae (zakaźne zapalenie spojówek owiec i kozic), Mycoplasma haemofelis u kotów, Mycoplasma cynos u psów oraz Mycoplasma mobile, pasożytująca na skrzelach ryb. Mycoplasma arthritidis szczurów jest modelem doświadczalnym zapalenia stawów i źródłem superantygenu MAM (ang. Mycoplasma arthritidis mitogen).
Mykoplazmozy zwierząt gospodarskich są dziś głównym polem, na którym fitoterapia przeciwmykoplazmowa ma realne zastosowanie i realne uzasadnienie ekonomiczne. Ograniczenia w stosowaniu antybiotyków w produkcji zwierzęcej zmusiły hodowców do szukania czegoś innego, a mykoplazmy, pozbawione ściany komórkowej, są wdzięcznym celem dla fitoncydów. Pracuję nad tym od lat w Dziale Badań i Rozwoju AdiFeed i w PANS w Krośnie.
Leczenie oficjalne
Skuteczne są wyłącznie leki hamujące syntezę białka lub replikację DNA: tetracykliny (doksycyklina, minocyklina), makrolidy (azytromycyna, klarytromycyna, erytromycyna, w Japonii jozamycyna), fluorochinolony (lewofloksacyna, moksyfloksacyna), linkozamidy (klindamycyna wobec Mycoplasma hominis), streptograminy (prystynamycyna) i pleuromutyliny (lefamulina). Nieczynne są beta-laktamy, glikopeptydy, fosfomycyna, sulfonamidy z trimetoprimem (mykoplazmy nie syntetyzują folianów, więc nie ma czego blokować) i ryfampicyna (naturalna oporność polimerazy RNA). Antybiotyki te działają na mykoplazmy bakteriostatycznie, dlatego kuracje są dłuższe niż w zakażeniach paciorkowcowych, a nawroty po zbyt krótkim leczeniu są regułą.
W zapaleniu płuc wywołanym przez Mycoplasma pneumoniae u dorosłych stosuje się doksycyklinę 100 mg 2 razy dziennie przez 7–14 dni, azytromycynę 500 mg pierwszego dnia i 250 mg przez kolejne 4 dni albo 500 mg dziennie przez 3 dni, klarytromycynę 500 mg 2 razy dziennie przez 10 dni. W oporności na makrolidy podaje się lewofloksacynę 500–750 mg raz dziennie lub moksyfloksacynę 400 mg raz dziennie przez 7–14 dni.
U dzieci lekiem pierwszego rzutu pozostaje azytromycyna 10 mg/kg pierwszego dnia, następnie 5 mg/kg przez 4 dni, albo klarytromycyna 15 mg/kg na dobę w 2 dawkach przez 10 dni. Wytyczne chińskie z 2023 roku dopuszczają tetracykliny od 8. roku życia i podają doksycyklinę 2,2 mg/kg na dawkę co 12 godzin, nie więcej niż 100 mg na dawkę, przez 10 dni; według stanowiska Amerykańskiej Akademii Pediatrii krótkie kuracje doksycykliną, do 21 dni, są dopuszczalne także poniżej 8. roku życia. W ciężkim i opornym na leczenie przebiegu te same wytyczne chińskie zalecają dołączenie metyloprednizolonu 2 mg/kg na dobę, zwykle nie więcej niż 60 mg, nie dłużej niż 2 tygodnie; immunoglobulin dożylnych rutynowo się nie podaje (Subspecialty Group of Respiratory i in., 2025).
Zakażenie Mycoplasma genitalium leczy się według wyniku badania oporności (Workowski i in., 2021; Jensen i in., 2022). Podaje się doksycyklinę 100 mg 2 razy dziennie przez 7 dni, po czym przy szczepie wrażliwym azytromycynę 1 g jednorazowo i 500 mg dziennie przez 3 dni (łącznie 2,5 g), a przy szczepie opornym lub nieznanym moksyfloksacynę 400 mg dziennie przez 7 dni. Trzeci rzut to prystynamycyna 1 g 4 razy dziennie przez 10 dni albo minocyklina 100 mg 2 razy dziennie przez 14 dni. Sama doksycyklina leczy tylko 30–40% chorych, minocyklina 40–70%, azytromycyna wobec szczepów wrażliwych 85–95%; wyleczenie potwierdza się badaniem NAAT po zakończeniu kuracji. Zakażenia Mycoplasma hominis leczy się doksycykliną 100 mg 2 razy dziennie przez 7–14 dni lub klindamycyną 300–450 mg 3–4 razy dziennie.
W Polsce z leków doustnych czynnych wobec mykoplazm zarejestrowane są m.in. Sumamed 500 mg tabletki powlekane (Teva Pharmaceuticals Polska), Klacid 500 mg tabletki powlekane (Viatris Healthcare), Doxycyclinum TZF 100 mg kapsułki twarde (Tarchomińskie Zakłady Farmaceutyczne Polfa), a spośród preparatów moksyfloksacyny Moloxin 400 mg (Krka), Moxifloxacin Aurovitas 400 mg i Kimoks 400 mg (Alkaloid-INT). Avelox, przez lata w Polsce najlepiej znany preparat moksyfloksacyny, nie jest już u nas zarejestrowany. Prystynamycyna (Pyostacine, Sanofi Winthrop Industrie) nie ma rejestracji w Polsce i może być sprowadzana wyłącznie w ramach importu docelowego, co w praktyce oznacza, że trzeci rzut leczenia Mycoplasma genitalium jest u nas trudno dostępny.
Lefamulina (Xenleta), pleuromutylina dopuszczona przez FDA 19 sierpnia 2019 roku i przez EMA 27 lipca 2020 roku do leczenia pozaszpitalnego zapalenia płuc, obejmuje także szczepy Mycoplasma pneumoniae oporne na makrolidy. Jej losy pokazują jednak, jak krucha bywa dostępność nowego antybiotyku. Pierwotny wytwórca, Nabriva Therapeutics, zaprzestał działalności w 2023 roku, jego akcje wycofano z obrotu na Nasdaq, a pozwolenie unijne przeszło na firmę Venipharm. Preparat formalnie pozostaje dopuszczony, lecz jego praktyczna dostępność w Europie jest ograniczona.
W weterynarii stosuje się tylozynę, tiamulinę (Denagard, Elanco, obecnie w Polsce bezterminowe pozwolenie ma granulat 450 mg/g; tiamulina dostępna jest także jako Biomutin, Tiamoscan, Cevamuline i Tiaclor), linkomycynę ze spektynomycyną, oksytetracyklinę, enrofloksacynę i florfenikol, a w profilaktyce szczepionki inaktywowane przeciwko Mycoplasma hyopneumoniae oraz żywe atenuowane szczepy Mycoplasma gallisepticum. Walnemulina (Econor) straciła pozwolenie unijne, którego zrzekł się podmiot odpowiedzialny, i nie jest już w Unii dostępna.
Czego dawna medycyna nie mogła wiedzieć
Dawna medycyna o mykoplazmach nie wiedziała nic i nie mogła wiedzieć. Zaraza płucna bydła była znana jako jednostka chorobowa, ale jej zarazka wyhodowano dopiero w 1898 roku. Pierwszy ludzki szczep wyosobniono w 1937 roku, Mycoplasma pneumoniae wyhodowano na podłożu bezkomórkowym w 1962 roku, a Mycoplasma genitalium w 1981 roku. Gerhard Madaus, mój idol, żył w latach 1890–1942 i gdy pisał Lehrbuch der biologischen Heilmittel (1938), nie mógł odnieść się do grupy drobnoustrojów, której klinicznie jeszcze nie wyodrębniono. To samo dotyczy Dragendorffa, Tschircha i Thomsa.
Dawna medycyna leczyła natomiast nieżyty oskrzeli, przewlekły suchy kaszel i owe nieokreślone „zapalenia opłucnej i płuc” surowcami lotnymi, żywicznymi i fenolowymi: zielem tymianku, zielem lebiodki, korą cynamonową, liściem bluszczu, olejkiem terpentynowym, mirrą, balsamami. Czyli dokładnie tymi, które nowsze oznaczenia MIC wskazują jako najsilniej hamujące mykoplazmy. Nie twierdzę, że dawni lekarze leczyli mykoplazmozy świadomie, bo tak nie było. Twierdzę, że empiria doszła do właściwej grupy surowców drogą obserwacji, i że dzisiejsze dane in vitro raczej tę empirię tłumaczą, niż jej przeczą. Zbieżność jest zbyt systematyczna, by była przypadkiem, i uważam to za mocny argument przeciw dość powszechnemu dziś przekonaniu, iż dawne lecznictwo działało wyłącznie przez sugestię.
Pierwotne atypowe zapalenie płuc, czyli choroba, którą dziś rozpoznajemy jako mykoplazmozę, ma przebieg podostry i przewlekający się, z długim, dręczącym kaszlem bez wyraźnej gorączki. Dawna medycyna miała na takie obrazy chorobowe osobne kategorie i osobne postępowanie, oparte na surowcach wykrztuśnych i napotnych, podawanych tygodniami. Medycyna oficjalna tę długość kuracji w dużej mierze porzuciła, a potem musiała do niej wrócić, bo przy bakteriostatycznym działaniu antybiotyków w mykoplazmozach siedmiodniowa kuracja często nie wystarcza.
Substancje roślinne i olejki eteryczne
Związki lipofilne wnikają w błonę sterolową i zaburzają jej uporządkowanie, a mykoplazma pozbawiona ściany nie ma przed nimi osłony. Najlepiej udokumentowany jest olejek z drzewa herbacianego (Melaleucae aetheroleum, Ph. Eur. monografia 1837, z Melaleuca alternifolia (Maiden et Betche) Cheel, Myrtaceae; farmakopea wymaga co najmniej 30% terpinen-4-olu i nie więcej niż 15% 1,8-cyneolu). Martin Harkenthal, Gabriele Layh-Schmitt i Jürgen Reichling (2000) oznaczyli MIC 0,006% (v/v) wobec dzikiego szczepu Mycoplasma pneumoniae i 0,003% wobec mutantów pozbawionych zdolności przylegania, czyli wartości sto razy niższe niż dla wszystkich innych badanych bakterii. Komórki traciły kształt kolbkowaty i zaokrąglały się, przy zachowanej ciągłości błony, bez wycieku zawartości. W teście HET-CAM (ang. hen’s egg test on chorioallantoic membrane) olejek nie dawał oznak podrażnienia w stężeniach poniżej 25%, a autorzy wprost zaproponowali jego użycie do płukania jamy ustnej i do inhalacji w zakażeniu mykoplazmowym.
Pio Maria Furneri i współpracownicy z Katanii (2006) potwierdzili to na materiale klinicznym. Zbadali 25 szczepów Mycoplasma hominis o małej liczbie pasaży, pochodzących z pochwy, cewki i szyjki macicy, wraz ze szczepem odniesienia PG21, jeden szczep kliniczny i szczep odniesienia FH Mycoplasma pneumoniae oraz cztery szczepy pochwowe i dwa szczepy odniesienia (PG18 i K7) Mycoplasma fermentans. Olejek, zgodny z normą ISO 4730 i zawierający 36,71% terpinen-4-olu oraz 22,20% gamma-terpinenu, hamował mykoplazmy w stężeniach 0,01–0,12% (v/v). Mycoplasma pneumoniae wykazała MIC 0,01%, Mycoplasma fermentans MIC90 0,06%, a Mycoplasma hominis była najmniej wrażliwa, z MIC90 0,12%. Ta kolejność wrażliwości powtarza się we wszystkich pracach. Gatunek oddechowy jest najłatwiejszym celem, a gatunki moczowo-płciowe wymagają stężeń o rząd wielkości wyższych. Ja uzyskiwałem podobne wyniki badań z użyciem olejku herbacianym, terpinen-4-olem, czy kamfenem.
Ta sama grupa (Furneri i in., 2012) zbadała olejek bergamotowy, z Citrus × bergamia (Risso) Risso et Poit., Rutaceae, gatunku uznawanego dziś za synonim Citrus × limon. Surowiec nie ma monografii Farmakopei Europejskiej, a Komitet do spraw Roślinnych Produktów Leczniczych EMA nie przyjął dla niego monografii unijnej, poprzestając w 2012 roku na oświadczeniu publicznym pod nazwą Citri bergamiae aetheroleum. Badano 42 szczepy Mycoplasma hominis, 2 szczepy Mycoplasma fermentans i szczep M129 Mycoplasma pneumoniae. Cały olejek hamował wzrost w stężeniu 0,5–1% (Mycoplasma hominis MIC50 0,5%, MIC90 1%; Mycoplasma pneumoniae 0,5%; Mycoplasma fermentans 1%). Składniki pojedyncze wypadły znacznie lepiej niż olejek jako całość. Octan linalilu (ang. linalyl acetate) hamował Mycoplasma pneumoniae i Mycoplasma hominis w stężeniu 0,015%, a Mycoplasma fermentans w 0,12%. Linalol działał na Mycoplasma pneumoniae w 0,015% i na Mycoplasma fermentans w 0,06%, lecz wobec Mycoplasma hominis dopiero w 1%. Limonen hamował Mycoplasma pneumoniae w 0,03%, Mycoplasma fermentans w 1%, a wobec Mycoplasma hominis wymagał 4% i więcej. Octan linalilu i linalol są głównymi składnikami olejku lawendowego (Lavandula angustifolia Mill., syn. Lavandula officinalis Chaix, Lamiaceae) i olejku szałwii muszkatołowej (Salvia sclarea L.), dlatego olejki te są moim zdaniem równorzędne z bergamotowym, a przy tym łatwiej dostępne i nieobciążone furanokumarynami.
Kora cynamonowca, karwakrol i tymol. Radek Sleha i współpracownicy (2014) przebadali 50 izolatów Mycoplasma hominis z wymazów z szyjki macicy. Olejek z kory cynamonowca cejlońskiego (Cinnamomum verum J.Presl, syn. Cinnamomum zeylanicum Blume, Lauraceae) zabijał 90% szczepów w stężeniu 500 µg/ml (MBC90), karwakrol w 600 µg/ml, a eugenol w 1000 µg/ml; anetol i gwajazulen działały słabiej. Karwakrol i tymol są głównymi fenolami olejków lebiodki (Origanum vulgare L.) i tymianku (Thymus vulgaris L., Lamiaceae).
Dla lebiodki mamy ponadto pracę weterynaryjną, którą uważam za jedną z ciekawszych w całym tym piśmiennictwie. Myung-Jin Choi, Mi-Hyun Hwang, Seung-Chun Park i współpracownicy (2009) przebadali dziesięć wyciągów roślinnych wobec Mycoplasma hyopneumoniae, m.in. z korzenia i pędu Berberis koreana Palib., Morus alba L., Dendrobium moniliforme (L.) Sw. i Fallopia japonica (Houtt.) Ronse Decr. Najsilniejszy okazał się wyciąg z Origanum vulgare, zawierający w analizie GC/MS karwakrol (68,78%), o-cymen (9,80%), terpinen (7,61%) i tymol (4,03%), o MIC 32 µg/ml. Ważniejsze jest co innego. Mycoplasma hyopneumoniae w stężeniu 30 µg/ml pobudzała w mysich makrofagach RAW 264.7 transkrypcję cyklooksygenazy 2, czynnika martwicy nowotworów alfa, interleukiny 1, interleukiny 6 i indukowanej syntazy tlenku azotu, a wyciąg lebiodki w stężeniu równym MIC obniżał wytwarzanie tlenku azotu o 60%. Surowiec działa więc dwutorowo, przeciwdrobnoustrojowo i przeciwzapalnie, a przy mykoplazmozach drugi z tych torów może być ważniejszy od pierwszego.
Wyciągi handlowe w porównaniu bezpośrednim. Amanda Arjoon, Charlotte Saylor i Meghan May (2012) zrobiły rzecz, której w fitochemii brakuje najbardziej: zbadały preparaty dostępne w handlu, obok siebie, tą samą metodą, wobec koziego szczepu GM12 Mycoplasma mycoides subsp. capri. Wodny wyciąg z kłącza gorzknika kanadyjskiego (Hydrastis canadensis L., Ranunculaceae) dał MIC 0,05 mg/ml przy MBC 0,5 mg/ml, czyli działał bakteriostatycznie, i był czynny wyłącznie wobec mykoplazmy, bo Escherichia coli i Bacillus subtilis znosiły stężenia powyżej 10 mg/ml. Handlowy wyciąg z liści lebiodki na etanolu 65% dał MIC 0,033 mg/ml i działał bakteriobójczo, co jest najniższą wartością w całej pracy. Olejek lebiodkowy wypadł słabiej, z MIC 0,092 mg/ml i MBC 0,167 mg/ml, a więc bakteriostatycznie. Wyciąg z tymianku na etanolu 15% hamował mykoplazmę w stężeniu 0,5 mg/ml, bakteriobójczo. Traganek (Astragalus mongholicus Bunge, syn. Astragalus membranaceus Fisch. ex Bunge, Fabaceae) działał w stężeniu 1 mg/ml bakteriobójczo, lecz wyłącznie jako świeżo przygotowany wyciąg etanolowy; wyciąg wodny i preparat handlowy na etanolu 50% były bezczynne, co autorki wiążą z nierozpuszczalnością składnika czynnego w wodzie. Wyciąg z owoców bzu czarnego (Sambucus nigra L., Viburnaceae, dawniej Adoxaceae i Caprifoliaceae) hamował mykoplazmę w stężeniu 0,38 mg/ml bakteriostatycznie; drugi badany preparat bzowy dał wprawdzie MIC 0,001 mg/ml, lecz zawierał sorbinian potasu i same autorki przypisują efekt konserwantowi. Olej nagietkowy nie działał nawet w stężeniu powyżej 95 mg/ml, a srebro koloidalne nie działało wcale, przy czym badany preparat miał stężenie wyjściowe zaledwie 0,03 mg/ml, więc zakres badanych stężeń był bardzo wąski. Za to w moich badaniach działały super przeciwko Mycoplasma związku ceru i bizmutu.
Z tej pracy płynie nauka o preparatyce, nie o botanice. Ten sam surowiec w różnym rozpuszczalniku i w różnym wieku daje wyniki różniące się dwudziestokrotnie, a najlepszy i najgorszy wynik dla lebiodki dotyczą tej samej rośliny. Autorki tłumaczą część tych różnic trwałością preparatów handlowych. Nalewki i intrakty każę więc sporządzać samodzielnie i ze świeżego surowca, i mówię to od lat na wykładach z receptury.
Hydroksytyrozol (ang. hydroxytyrosol, 3,4-dihydroksyfenyloetanol, produkt hydrolizy oleuropeiny z liści i owoców oliwki europejskiej, Olea europaea L., Oleaceae; Oleae folium ma monografię Ph. Eur. 1878, a wyciąg suchy monografię 2313) jest jednym z najsilniejszych znanych naturalnych inhibitorów mykoplazm. Furneri i współpracownicy (2004) oznaczyli MIC 0,5 µg/ml wobec Mycoplasma pneumoniae, 0,25 µg/ml wobec Mycoplasma fermentans i 0,03 µg/ml wobec 90% z 20 szczepów Mycoplasma hominis. Są to stężenia niższe od tych, jakich wymagają olejki eteryczne, o dwa do czterech rzędów wielkości, zależnie od gatunku. Czy są osiągalne w tkankach po spożyciu oliwy, nie wiadomo, bo badań farmakokinetycznych pod tym kątem nie znalazłem, a stężenia wolnego hydroksytyrozolu w osoczu po posiłku są rzędu nanomoli na litr.
Zestawiam to z pracą Al-Momaniego i współpracowników (2007), w której wyciąg z oliwki nie działał wobec mykoplazm kozich wcale. O aktywności decyduje frakcja i sposób przygotowania, a nie roślina jako taka. W oliwce czynny jest produkt hydrolizy oleuropeiny, nie sama oleuropeina, więc wyciąg niehydrolizowany może być bezczynny; oleuropeina pozostaje natomiast użytecznym wskaźnikiem standaryzacji surowca i prekursorem hydrolizowanym w przewodzie pokarmowym, i dlatego na nią standaryzuje się preparaty handlowe.
Alkaloidy protoberberynowe. Chenchen Wang i współpracownicy z Huazhong Agricultural University (2026) wyłonili w przesiewie czterech przedstawicieli tej grupy. Epiberberyna i jatroryzyna (ang. jatrorrhizine) hamowały zjadliwy szczep ES-2 Mycoplasma hyopneumoniae w stężeniu 8 µg/ml, a berberyna i koptyzyna w 16 µg/ml; działanie bakteriobójcze, zależne od czasu i stężenia, występowało od 32 µg/ml. W kulturach komórkowych wszystkie cztery alkaloidy podnosiły przeżywalność komórek zakażonych, obniżały ekspresję czynnika martwicy nowotworów alfa, interleukiny 6 i interleukiny 1 beta oraz wykazywały niską cytotoksyczność wobec komórek gospodarza. W modelu zakażenia na świniach jatroryzyna złagodziła objawy kliniczne, obniżyła ładunek drobnoustroju w płucach i ograniczyła zmiany histopatologiczne w stopniu porównywalnym z florfenikolem, a tego od surowca roślinnego w weterynarii zwykle się nie oczekuje. Wszystkie cztery alkaloidy są charakterystycznymi składnikami kłącza Coptis chinensis Franch., Ranunculaceae (Rhizoma Coptidis, chiń. huang lian), przy czym autorzy badali związki wyodrębnione, nie wyciąg z tego surowca. Sama berberyna występuje też w gorzkniku kanadyjskim, berberysie zwyczajnym (Berberis vulgaris L., Berberidaceae) i mahonii (Berberis aquifolium Pursh). W moich badaniach zarówno mahonia (ościał) jak i berberys hamowały Mycoplasma dopiero w stężeniu 0,1%
Bajkalina (ang. baicalin, 7-O-glukuronid bajkaleiny) z korzenia tarczycy bajkalskiej (Scutellaria baicalensis Georgi, Lamiaceae; Scutellariae baicalensis radix, Ph. Eur. monografia 2438, chiń. huangqin) hamuje Mycoplasma pneumoniae ATCC 15531 w stężeniu 16 µg/ml. W kulturze, w tym samym stężeniu i przez trzy dni, obniżała ekspresję adhezyny P1 na poziomie mRNA i białka. U myszy BALB/c w dawce 80 mg/kg na dobę podawanej sondą przez 6 dni zmniejszała zmiany histopatologiczne w płucach i podnosiła ekspresję naskórkowego czynnika wzrostu EGF, co autorzy wiążą z przyspieszoną naprawą nabłonka (Meng i in., 2013). Hamowanie P1 wykazano in vitro, nie u zwierząt. Zawierający bajkalinę preparat Qinbaiqingfei (Qinbai) jest pierwszym chińskim lekiem roślinnym dopuszczonym do leczenia zakażeń Mycoplasma pneumoniae, w tym szczepów opornych; jego MIC wobec tego samego szczepu wyniosło 100 µg/ml, czyli sama bajkalina jest ponad sześciokrotnie silniejsza od preparatu złożonego.
Bylice. Wyciągi metanolowe z Artemisia herba-alba Asso (ang. white wormwood, niem. Weißer Wermut) i bylicy drzewkowatej (Artemisia arborescens L., Asteraceae) hamowały Mycoplasma mycoides subsp. mycoides LC, Mycoplasma capricolum subsp. capricolum i Mycoplasma putrefaciens w stężeniach 3,125–12,5 mg/ml, przy 32 badanych izolatach. Czosnek (Allium sativum L.) i granat (Punica granatum L.) działały słabo i tylko na część izolatów, a oliwka i kolokwinta (Citrullus colocynthis (L.) Schrad.) nie działały wcale (Al-Momani i in., 2007).
Liść bluszczu (Hedera helix L., Araliaceae; Hederae folium, Ph. Eur. monografia 2148, przy czym monografia EMA/HMPC nosi tytuł Hederae helicis folium) nie ma, o ile wiem, żadnych oznaczeń MIC wobec Mollicutes. W starszych zestawieniach, także w moich, pojawiała się wartość 1,25–5 mg/ml dla mieszaniny saponin bluszczu, przypisywana mykoplazmom. Sprawdziłem to źródło ponownie i okazało się, że dane te dotyczą bakterii Gram-ujemnych (Salmonella, Shigella, Pseudomonas, Escherichia coli, Proteus), a przeglądowa praca, z której pochodzą, mykoplazm nie wspomina ani raz. Wycofuję więc to twierdzenie, choć w moich badaniach wyciągi wodne z bluszczu hamowały Mycoplasma w stężeniu 0,05%.
Grzyby, porosty, glony i sole mineralne
Jedyną grupą leków przeciwmykoplazmowych pochodzenia grzybowego są pleuromutyliny. Pleuromutylinę, diterpen o szkielecie tricyklicznym, wyosobnili w 1951 roku Frederick Kavanagh, Annette Hervey i William Jacob Robbins z Columbia University i New York Botanical Garden, z hodowli grzybów kapeluszowych Pleurotus mutilus (Fr.) Gillet i Pleurotus passeckerianus Pilát. Taksonomia tych gatunków zmieniła się od tego czasu i w piśmiennictwie farmaceutycznym podawana jest zazwyczaj błędnie. Pleurotus passeckerianus to dziś Clitopilus passeckerianus (Pilát) Singer, Entolomataceae. Pleurotus mutilus bywa podawany jako Clitopilus mutilus (Fr.) Singer, natomiast Index Fungorum jako nazwę bieżącą utrzymuje Omphalina mutila (Fr.) P.D. Orton, więc rozpowszechnione zdanie, że oba gatunki należą dziś do rodzaju Clitopilus, nie jest ścisłe.
Pleuromutylina blokuje centrum peptydylotransferazy podjednostki 50S rybosomu, czyli miejsce inne niż to, na które działają makrolidy, co tłumaczy jej czynność wobec szczepów makrolidoopornych. Jej półsyntetyczne pochodne to tiamulina (1979) i walnemulina (1999), stosowane u świń i drobiu, retapamulina (2007, maść) oraz lefamulina (2019), pierwsza pleuromutylina do stosowania ogólnego u człowieka. Od wyosobnienia związku do jego pierwszego zastosowania ogólnoustrojowego w medycynie ludzkiej minęło 68 lat.
Lakownicy żółtawej (Ganoderma lucidum (Curtis) P. Karst.) ani twardnika japońskiego (Lentinula edodes (Berk.) Pegler) nie badano, o ile mi wiadomo, wobec mykoplazm. Ich beta-glukany działają immunomodulująco i to działanie może mieć w mykoplazmozach znaczenie, lecz bezpośredniego efektu przeciwmykoplazmowego nie wykazano i nie należy go sugerować.
Dla porostów i kwasu usninowego (Usnea, Cladonia) opublikowano liczne dane wobec gronkowców i prątków, ale oznaczeń MIC wobec Mollicutes nie ma w ogóle; sprawdziłem to w PubMed i zapytanie o kwas usninowy i mykoplazmy zwraca zero rekordów. Dodam, że kwas usninowy jest po podaniu doustnym hepatotoksyczny. W hodowli hepatocytów mysich w stężeniu 5 µmol/l powodował w ciągu 16 godzin martwicę 98% komórek, przez rozkojarzenie fosforylacji oksydacyjnej, spadek ATP i stres oksydacyjny (Han i in., 2004). Klinicznie problem ujawnił się przy suplemencie LipoKinetix, po którym opisano siedem przypadków ostrego uszkodzenia wątroby w ciągu trzech miesięcy od rozpoczęcia zażywania, w tym jeden przypadek piorunującej niewydolności wątroby z obrzękiem mózgu; preparat zawierał jednak także norefedrynę, kofeinę, johimbinę i dijodotyroninę, a autorzy przypisali hepatotoksyczność preparatowi, nie samemu kwasowi usninowemu (Favreau i in., 2002).
Glony morskie przebadał zespół brazylijski (Bianco i in., 2015), obejmując 29 organizmów morskich: 14 glonów i 15 bezkręgowców. Spośród glonów 92%, czyli 13 z 14, wykazało jakąkolwiek aktywność wobec Mollicutes, a jedynym bezczynnym był krasnorost Digenea simplex (Wulfen) C.Agardh. Najniższe wartości MIC, 250 µg/ml, uzyskały wobec szczepu FH Mycoplasma pneumoniae brunatnice Canistrocarpus cervicornis (Kützing) De Paula et De Clerck i Lobophora variegata (J.V.Lamouroux) Womersley ex E.C.Oliveira oraz krasnorost Gracilaria sp. Wyciągi frakcjonowane wypadły lepiej: dichlorometanowy z Canistrocarpus cervicornis 100 µg/ml, a heksanowy z Laurencia dendroidea J.Agardh 31,25 µg/ml, natomiast wyodrębnione związki czyste, w tym elatol, były bezczynne. Nawet najlepsze z tych wartości są o rzędy wielkości słabsze niż dla olejków i hydroksytyrozolu, więc widzę w glonach kierunek badawczy, a nie surowiec leczniczy.
Sole mineralne nie mają swoistego działania przeciwmykoplazmowego, za wyjątkiem podanego wcześniej bizmutu i ceru. Większość mykoplazm znosi octan talu w stężeniu od 1:8000 do 1:2000, czyli 0,125–0,5 g/l, zabójczym dla innych bakterii, i na tym opiera się działanie podłoży selektywnych; ureaplazmy i Mycoplasma genitalium są jednak przez octan talu hamowane, dlatego przy ich poszukiwaniu się go pomija, a coraz częściej zastępuje się go siarczanem kolistyny. Jod (powidon jodowany), chlorheksydyna, czwartorzędowe sole amoniowe, etanol 70% i podchloryny niszczą mykoplazmy bez trudu, bo błona pozbawiona ściany jest bezbronna wobec detergentów i utleniaczy. Ma to znaczenie w dezynfekcji pomieszczeń, sprzętu i rąk, a nie w leczeniu. Cynk i selen polecam tylko przy niedoborach, jako warunek prawidłowej odpowiedzi limfocytów T. Ani selen, ani cynk nie hamowały Mycoplasma w moich badaniach.
Kwestia nośnika
Przy zestawianiu tych wszystkich wartości MIC łatwo popełnić błąd, który popełnia dziś większość piszących o fitoterapii zakażeń. Problemem nie jest zabicie mykoplazmy. Mykoplazma, pozbawiona ochronnej ściany komórkowej, jest wrażliwa na każdy, nawet słaby antyseptyk, i wartości MIC z tabel są tego najlepszym dowodem. Problemem jest utrzymanie stężenia fitoncydu w tkance dość długo i na dość wysokim poziomie. Nabłonki są bardzo aktywne metabolicznie i szybko zużywają fitoncydy, a mykoplazma siedzi na ich powierzchni, w warstwie śluzu, osłonięta fragmentami błon gospodarza. Decydujący jest więc nośnik i swego rodzaju „przetrzymywacz” fitoncydu w komórce i w wydzielinie.
Do tego wniosku doszedłem przy pracach nad preparatem adiSalmoSOL w AdiFeed i uważam go za ważniejszy od kolejnej tabeli MIC. Kierunek, który polecam, to zawieszenie fitoncydów na fosfolipidach, czyli na lecytynie sojowej, rzepakowej albo słonecznikowej. Fosfolipidy tworzą kompleksy ze związkami lipofilnymi, a podane doustnie są w płucach zużywane do odbudowy surfaktantu pęcherzykowego. Daje to szansę na uzyskanie wyższego stężenia fitoncydu właśnie tam, gdzie mykoplazma bytuje: w płucach, w mazi stawowej, w nabłonku narządów płciowych. Preparat przybiera wówczas postać mleczka koloidalnego mieszalnego z wodą, co w podawaniu zwierzętom do wody pitnej jest zaletą samą w sobie.
Z tego samego powodu w fitoterapii człowieka większą wagę przywiązuję do postaci leku niż do surowca. Olejek podany na cukrze dociera do oskrzeli w stężeniu, którego nie da się przewidzieć z tabeli MIC; ten sam olejek w kapsułce dojelitowej zachowuje się inaczej, a w inhalacji parowej jeszcze inaczej. Przy mykoplazmozach dróg oddechowych inhalacja jest drogą najkrótszą i najbardziej sensowną.
Układ immunologiczny wobec mykoplazm
Mykoplazmy nie mają lipopolisacharydu ani peptydoglikanu, ale ich błona jest usiana lipoproteinami, które należą do najsilniejszych znanych agonistów receptorów TLR2, działających w heterodimerach z TLR1 i TLR6. Modelowym przykładem jest lipopeptyd MALP-2 z Mycoplasma fermentans, wyosobniony i zsyntetyzowany przez Petera Mühlradta i współpracowników (1997), pobudzający makrofagi przy odpowiedzi półmaksymalnej w stężeniu 10⁻¹¹ mol/l. Sygnał przez MyD88 i NF-kappaB uruchamia wydzielanie interleukiny 1 beta, interleukiny 6, interleukiny 8 i czynnika martwicy nowotworów alfa, toksyna CARDS aktywuje inflamasom NLRP3, a limfocyty Th17 wydzielają interleukinę 17.
Paradoks mykoplazmowego zapalenia płuc polega na tym, że uszkodzenie tkanki jest w większej mierze dziełem gospodarza niż drobnoustroju. Ciężkość choroby koreluje ze stężeniem interleukiny 8, interleukiny 18 i interferonu gamma, a glikokortykosteroidy łagodzą postacie oporne na antybiotyki, co znalazło odbicie w wytycznych chińskich. Właśnie dlatego surowce o podwójnym działaniu, przeciwdrobnoustrojowym i przeciwzapalnym, mają w tej chorobie szczególne uzasadnienie.
Odporność nabyta rozwija się w ciągu 1–2 tygodni: przeciwciała IgM, potem IgG i wydzielnicze IgA skierowane przeciw adhezynie P1 i glikolipidom błony. Chorzy z agammaglobulinemią zapadają na przewlekłe, niszczące zapalenia stawów wywołane przez Mycoplasma hominis i ureaplazmy, co dowodzi, że o eliminacji zarazka decyduje odpowiedź humoralna. Odporność jest jednak niepełna i krótkotrwała, a zakażenia nawracają co kilka lat.
Mykoplazmy wykształciły wiele sposobów przetrwania (Wang i in., 2023). Zmienność antygenową zapewniają rodziny lipoprotein zmiennych (Vlp u Mycoplasma hyorhinis, Vaa u Mycoplasma hominis), a u Mycoplasma genitalium rekombinacja genu adhezyny MgPa. System MIB-MIP, opisany przez Yonathana Arfiego i współpracowników (2016), wychwytuje immunoglobuliny G białkiem MIB o masie 83 kDa i odcina ich domenę VH białkiem MIP o masie 97 kDa, unieczynniając przeciwciała na powierzchni komórki. Do tego dochodzą biofilm, wnikanie do komórek nabłonka (Mycoplasma penetrans, Mycoplasma genitalium), nukleazy rozkładające sieci neutrofilowe, opłaszczanie się fragmentami błon gospodarza oraz mimikra cząsteczkowa.
Mimikra zasługuje na osobne zdanie, bo tłumaczy całą listę powikłań pozapłucnych. Glikolipidy błony Mycoplasma pneumoniae przypominają antygen I erytrocytów. Lesley Loomes, Ten Feizi i współpracownicy (1984) wykazali w Nature, że receptorami dla tej mykoplazmy są sialilowane oligosacharydy typu Ii, a w zakażeniu pojawiają się wysokomiarowe autoprzeciwciała anty-I klasy IgM, czyli zimne aglutyniny; stwierdza się je u około połowy chorych i u części wywołują hemolizę (Waites i in., 2017). Podobieństwo do galaktocerebrozydu mieliny tłumaczy zespół Guillaina-Barrégo i zapalenia mózgu, a reaktywność krzyżowa z keratynocytami zmiany skórno-śluzówkowe. Superantygen MAM z Mycoplasma arthritidis łączy cząsteczki MHC klasy II z regionem V beta receptora limfocytów T, pobudzając poliklonalnie całe klony, co u szczurów prowadzi do zapalenia stawów.
Próby szczepień inaktywowanymi szczepami Mycoplasma pneumoniae prowadzono w latach 60. XX wieku i przerwano. Skuteczność była niska, a u części zaszczepionych, którzy nie wytworzyli przeciwciał, zakażenie przebiegało ciężej niż w grupie placebo (Smith i in., 1967). Metaanaliza sześciu badań klinicznych obejmujących 67 268 osób oszacowała skuteczność na 36% wobec zapaleń płuc o dowolnej etiologii oraz na 54% albo 42% wobec zapaleń płuc o etiologii mykoplazmowej, zależnie od przyjętego sposobu rozpoznania. Nie wykazała przy tym istotnych reakcji niepożądanych, w tym autoimmunizacyjnych, i zalecała powrót do prac nad tymi szczepionkami (Linchevski i in., 2009). Do dziś szczepionki dla ludzi nie ma, a przy nawrocie epidemii od 2023 roku jest to brak odczuwalny.
Dawki, zastosowania praktyczne, receptury
Antybiotyk jest podstawą leczenia potwierdzonych zakażeń i żadna z opisanych substancji roślinnych go nie zastąpi. Fitoterapię stosuję jako uzupełnienie w ostrym okresie, przy kaszlu i zapaleniu oskrzeli, w nawracających zakażeniach dróg moczowo-płciowych Mycoplasma hominis i ureaplazmami, w rekonwalescencji po mykoplazmowym zapaleniu płuc, która bywa długa i uciążliwa, oraz w weterynarii, gdzie ogranicza zużycie antybiotyków. Dane in vitro przenoszę na dawki farmakopealne i dawki Komisji E, a nie ekstrapoluję wartości MIC na organizm, bo byłoby to rachowanie bez pokrycia.
Olejek z drzewa herbacianego w dużych dawkach nie nadaje się do użytku wewnętrznego. Natomiast dawka 3-4 kropli 2-3 razy dziennie nie jest pewna, raczej działa miejscowo. DL50 u szczura po podaniu doustnym wynosi 1,9–2,6 g/kg w zależności od szczepu zwierząt, a u małych dzieci opisano ataksję, senność i splątanie już po spożyciu poniżej 10 ml czystego olejku, u dorosłego zaś śpiączkę trwającą 12 godzin po wypiciu około połowy szklanki. Olejków nie powinno wlewać się do nebulizatorów dzieciom poniżej 6 lat. Należy zachować ostrożność z olejkami bogatymi w mentol ze względu na ryzyko skurczu krtani u małych dzieci. Dzieciom małym może też zaszkodzić 1,8-cyneol.
• Inhalacje parowe: 3 krople olejku z drzewa herbacianego i 2 krople olejku eukaliptusowego lub lawendowego na 1 l wody o temp. 60–70 °C, wdychać 10 minut, 2 razy dziennie przez 7–10 dni.
• Płukanie jamy ustnej i gardła: 2–3 krople olejku z drzewa herbacianego na szklankę ciepłej wody z łyżeczką gliceryny lub miodu, płukać 3 razy dziennie.
• Ziele tymianku (Thymi herba, Ph. Eur. 0865, co najmniej 12 ml/kg olejku, w którym suma tymolu i karwakrolu stanowi co najmniej 40%): napar z 1–2 g, czyli jednej łyżeczki, na filiżankę wody kilka razy dziennie; nalewka (Tinctura Thymi 1:10) 40 kropli do 3 razy dziennie, wg Komisji E i ESCOP.
• Ziele lebiodki (Origani herba, Ph. Eur. 1880): napar z 1 łyżki, ok. 2 g, na 200 ml wrzątku, 3 razy dziennie; olejek lebiodkowy w kapsułkach dojelitowych 50–100 mg, standaryzowany na 60–70% karwakrolu, 2 razy dziennie do posiłku przez 2–3 tygodnie, nie w ciąży.
• Kora cynamonowca (Cinnamomi cortex, Ph. Eur. 0387): 2–4 g dziennie w naparze; olejek cynamonowy (Cinnamomi zeylanici corticis aetheroleum, Ph. Eur. 1501) 0,05–0,2 g dziennie, to jest 1–3 krople na miodzie lub cukrze po posiłku, nie dłużej niż 2–3 tygodnie. Aldehyd cynamonowy uczula i drażni błony śluzowe, olejku nie podaję w ciąży.
• Liść oliwki (Oleae folium, Ph. Eur. 1878) i oliwa: wyciąg standaryzowany na 15–20% oleuropeiny 500 mg 2 razy dziennie. Oświadczenie zdrowotne dopuszczone rozporządzeniem Komisji (UE) nr 432/2012 wolno stosować tylko do oliwy zawierającej co najmniej 5 mg hydroksytyrozolu i jego pochodnych w 20 g, a efekt odnosi się do ochrony lipidów krwi przed stresem oksydacyjnym przy dziennym spożyciu 20 g oliwy; wiele oliw tego progu nie osiąga.
• Korzeń tarczycy bajkalskiej (Scutellariae baicalensis radix, Ph. Eur. 2438): odwar z 3–9 g dziennie lub wyciąg standaryzowany na bajkalinę 250–500 mg 2 razy dziennie. Przy kuracji dłuższej niż miesiąc kontroluję aminotransferazy, bo opisano rzadkie uszkodzenia wątroby.
• Berberyna: 300–500 mg 2–3 razy dziennie przez 4–8 tygodni, nie w ciąży i nie u noworodków, bo wypiera bilirubinę z połączeń z albuminą; ostrożnie z lekami metabolizowanymi przez CYP3A4. Nalewka z gorzknika (Tinctura Hydrastis 1:10) 2–4 ml 3 razy dziennie.
• Liść bluszczu (Hederae folium): wyciąg suchy o DER (ang. drug extract ratio, stosunek surowca do wyciągu) 5–7,5:1, rozpuszczalnik etanol 30% (m/m), 35 mg 3 razy dziennie, czyli preparat Prospan (Engelhard Arzneimittel), w kaszlu pomykoplazmowym przez 7–14 dni. Hedelix (w Polsce Dr. Theiss Naturwaren) zawiera wyciąg o DER 2,2–2,9:1, więc dawkowania Prospanu nie wolno na niego przenosić; stosować wg ulotki.
• Species antimycoplasmaticae, mój skład: Thymi herba 30 g, Origani herba 30 g, Salviae folium 20 g, Cinnamomi cortex 10 g, Liquiritiae radix 10 g. Jedną łyżkę mieszanki zalać 200 ml wrzątku, naparzać pod przykryciem 20 minut, pić 3 razy dziennie po 150–200 ml przez 14 dni.
• Intractum antimycoplasmaticum, mój skład: 100 g świeżo rozdrobnionego ziela tymianku i lebiodki w równych częściach zalać 300 ml alkoholu 70%, pozostawić na 7–10 dni w temp. ok. 20 °C, przefiltrować. Zażywać 5–10 ml 3 razy dziennie w niewielkiej ilości wody.
• Drób: w stadach niosek z wysokimi mianami przeciwciał przeciw Mycoplasma synoviae zastosowano preparat fitoncydowy adiSalmoSOL PF (wyciągi roślinne, olejki eteryczne, kwasy organiczne, sole mineralne, alkaloidy) w dawce 1,5 l na 1000 l wody do picia przez 3 dni w 7., 11. i 15. tygodniu życia, co zmniejszyło upadki (Różański, 2013).
Dla drobiu mamy też dane niezależne. Serpil Kahya i współpracownicy (2015) podawali nioskom naturalnie zakażonym Mycoplasma gallisepticum preparat Mentofin (10% olejku eukaliptusowego i 10% mentolu, 33% nośników płynnych, 47% saponin; Ewabo, Niemcy), pierwszego dnia w oprysku stada, a w dniach 2.–4. do wody pitnej w dawce 200 ml na 1000 l, powtarzając to w 2. i 5. tygodniu życia. Odsetek dodatnich posiewów z tchawicy obniżył się w grupie leczonej z 85% (17 z 20) do 5% (1 z 20), a w grupie kontrolnej z 80% (16 z 20) do 35% (7 z 20). Wynik w metodzie real-time PCR spadł w grupie leczonej ze 100% do 20%, a w kontrolnej z 95% do 80%.
Piśmiennictwo wybrane
Al-Momani, W., Abu-Basha, E., Janakat, S., Nicholas, R. A. J., & Ayling, R. D. (2007). In vitro antimycoplasmal activity of six Jordanian medicinal plants against three Mycoplasma species. Tropical Animal Health and Production, 39(7), 515–519. https://doi.org/10.1007/s11250-007-9033-1
Arfi, Y., Minder, L., Di Primo, C., Le Roy, A., Ebel, C., Coquet, L., Claverol, S., Vashee, S., Jores, J., Blanchard, A., & Sirand-Pugnet, P. (2016). MIB-MIP is a mycoplasma system that captures and cleaves immunoglobulin G. Proceedings of the National Academy of Sciences of the USA, 113(19), 5406–5411. https://doi.org/10.1073/pnas.1600546113
Arjoon, A. V., Saylor, C. V., & May, M. (2012). In vitro efficacy of antimicrobial extracts against the atypical ruminant pathogen Mycoplasma mycoides subsp. capri. BMC Complementary and Alternative Medicine, 12, 169. https://doi.org/10.1186/1472-6882-12-169
Balish, M., Bertaccini, A., Blanchard, A., Brown, D., Browning, G., Chalker, V., Frey, J., Gasparich, G., Hoelzle, L., Knight, T., Knox, C., Kuo, C. H., Manso-Silván, L., May, M., Pollack, J. D., Ramírez, A. S., Spergser, J., Taylor-Robinson, D., Volokhov, D., & Zhao, Y. (2019). Recommended rejection of the names Malacoplasma gen. nov., Mesomycoplasma gen. nov., Metamycoplasma gen. nov., Metamycoplasmataceae fam. nov., Mycoplasmoidaceae fam. nov., Mycoplasmoidales ord. nov., Mycoplasmoides gen. nov., Mycoplasmopsis gen. nov. [Gupta, Sawnani, Adeolu, Alnajar and Oren 2018] and all proposed species comb. nov. placed therein. International Journal of Systematic and Evolutionary Microbiology, 69(11), 3650–3653. https://doi.org/10.1099/ijsem.0.003632
Bianco, É. M., Krug, J. L., Zimath, P. L., Kroger, A., Paganelli, C. J., Boeder, A. M., dos Santos, L., Tenfen, A., Ribeiro, S. M., Kuroshima, K. N., Alberton, M. D., de Cordova, C. M. M., & Rebelo, R. A. (2015). Antimicrobial (including antimollicutes), antioxidant and anticholinesterase activities of Brazilian and Spanish marine organisms: Evaluation of extracts and pure compounds. Revista Brasileira de Farmacognosia, 25(6), 668–676. https://doi.org/10.1016/j.bjp.2015.07.018
Borrel, A., Dujardin-Beaumetz, E., Jeantet, P., & Jouan, C. (1910). Le microbe de la péripneumonie. Annales de l’Institut Pasteur, 24, 168–179.
Chanock, R. M., Hayflick, L., & Barile, M. F. (1962). Growth on artificial medium of an agent associated with atypical pneumonia and its identification as a PPLO. Proceedings of the National Academy of Sciences of the USA, 48(1), 41–49. https://doi.org/10.1073/pnas.48.1.41
Choi, M.-J., Hwang, M.-H., Choi, J.-Y., Lee, J.-S., & Park, S.-C. (2009). Anti-mycoplasmal and anti-inflammatory effect of Origanum vulgare extract against Mycoplasma hyopneumoniae. Korean Journal of Veterinary Research, 49(3), 185–193.
Dienes, L., & Edsall, G. (1937). Observations on the L-organism of Klieneberger. Proceedings of the Society for Experimental Biology and Medicine, 36(5), 740–744. https://doi.org/10.3181/00379727-36-9380
Drexler, H. G., & Uphoff, C. C. (2002). Mycoplasma contamination of cell cultures: Incidence, sources, effects, detection, elimination, prevention. Cytotechnology, 39(2), 75–90. https://doi.org/10.1023/A:1022913015916
Dungu, K. H. S., Holm, M., Hartling, U., Jensen, L. H., Nielsen, A. B., Schmidt, L. S., Toustrup, L. B., Hansen, L. H., Dahl, K. W., Matthesen, K. T., Nordholm, A. C., Uldum, S., Emborg, H.-D., Rytter, M. J. H., & Nygaard, U. (2024). Mycoplasma pneumoniae incidence, phenotype, and severity in children and adolescents in Denmark before, during, and after the COVID-19 pandemic: A nationwide multicentre population-based cohort study. The Lancet Regional Health – Europe, 47, 101103. https://doi.org/10.1016/j.lanepe.2024.101103
Eaton, M. D., Meiklejohn, G., & van Herick, W. (1944). Studies on the etiology of primary atypical pneumonia: A filterable agent transmissible to cotton rats, hamsters, and chick embryos. Journal of Experimental Medicine, 79(6), 649–668. https://doi.org/10.1084/jem.79.6.649
ESGMAC MAPS study group. (2025). Global spatiotemporal dynamics of Mycoplasma pneumoniae re-emergence after COVID-19 pandemic restrictions: An epidemiological and transmission modelling study. The Lancet Microbe, 6(4), 101019. https://doi.org/10.1016/j.lanmic.2024.101019
Favreau, J. T., Ryu, M. L., Braunstein, G., Orshansky, G., Park, S. S., Coody, G. L., Love, L. A., & Fong, T.-L. (2002). Severe hepatotoxicity associated with the dietary supplement LipoKinetix. Annals of Internal Medicine, 136(8), 590–595. https://doi.org/10.7326/0003-4819-136-8-200204160-00008
Fraser, C. M., Gocayne, J. D., White, O., Adams, M. D., Clayton, R. A., Fleischmann, R. D., Bult, C. J., Kerlavage, A. R., Sutton, G., Kelley, J. M., … Venter, J. C. (1995). The minimal gene complement of Mycoplasma genitalium. Science, 270(5235), 397–403. https://doi.org/10.1126/science.270.5235.397
Furneri, P. M., Mondello, L., Mandalari, G., Paolino, D., Dugo, P., Garozzo, A., & Bisignano, G. (2012). In vitro antimycoplasmal activity of Citrus bergamia essential oil and its major components. European Journal of Medicinal Chemistry, 52, 66–69. https://doi.org/10.1016/j.ejmech.2012.03.005
Furneri, P. M., Paolino, D., Saija, A., Marino, A., & Bisignano, G. (2006). In vitro antimycoplasmal activity of Melaleuca alternifolia essential oil. Journal of Antimicrobial Chemotherapy, 58(3), 706–707. https://doi.org/10.1093/jac/dkl269
Furneri, P. M., Piperno, A., Saija, A., & Bisignano, G. (2004). Antimycoplasmal activity of hydroxytyrosol. Antimicrobial Agents and Chemotherapy, 48(12), 4892–4894. https://doi.org/10.1128/AAC.48.12.4892-4894.2004
Gibson, D. G., Glass, J. I., Lartigue, C., Noskov, V. N., Chuang, R.-Y., Algire, M. A., Benders, G. A., Montague, M. G., Ma, L., … Venter, J. C. (2010). Creation of a bacterial cell controlled by a chemically synthesized genome. Science, 329(5987), 52–56. https://doi.org/10.1126/science.1190719
Gupta, R. S., Sawnani, S., Adeolu, M., Alnajar, S., & Oren, A. (2018). Phylogenetic framework for the phylum Tenericutes based on genome sequence data: Proposal for the creation of a new order Mycoplasmoidales ord. nov., containing two new families Mycoplasmoidaceae fam. nov. and Metamycoplasmataceae fam. nov. harbouring Eperythrozoon, Ureaplasma and five novel genera. Antonie van Leeuwenhoek, 111(9), 1583–1630. https://doi.org/10.1007/s10482-018-1047-3
Han, D., Matsumaru, K., Rettori, D., & Kaplowitz, N. (2004). Usnic acid-induced necrosis of cultured mouse hepatocytes: Inhibition of mitochondrial function and oxidative stress. Biochemical Pharmacology, 67(3), 439–451. https://doi.org/10.1016/j.bcp.2003.09.032
Harkenthal, M., Layh-Schmitt, G., & Reichling, J. (2000). Effect of Australian tea tree oil on the viability of the wall-less bacterium Mycoplasma pneumoniae. Pharmazie, 55(5), 380–384.
Himmelreich, R., Hilbert, H., Plagens, H., Pirkl, E., Li, B.-C., & Herrmann, R. (1996). Complete sequence analysis of the genome of the bacterium Mycoplasma pneumoniae. Nucleic Acids Research, 24(22), 4420–4449. https://doi.org/10.1093/nar/24.22.4420
Hutchison, C. A., Chuang, R.-Y., Noskov, V. N., Assad-Garcia, N., Deerinck, T. J., Ellisman, M. H., Gill, J., Kannan, K., Karas, B. J., … Venter, J. C. (2016). Design and synthesis of a minimal bacterial genome. Science, 351(6280), aad6253. https://doi.org/10.1126/science.aad6253
Jensen, J. S., Cusini, M., Gomberg, M., Moi, H., Wilson, J., & Unemo, M. (2022). 2021 European guideline on the management of Mycoplasma genitalium infections. Journal of the European Academy of Dermatology and Venereology, 36(5), 641–650. https://doi.org/10.1111/jdv.17972
Kahya, S., Onat, K., Erköse, E., Temelli, S., Eyigör, A., & Çarlı, K. T. (2015). Effect of Mentofin application on the clearance of Mycoplasma gallisepticum (MG) from naturally infected layer chickens’ trachea. Ankara Üniversitesi Veteriner Fakültesi Dergisi, 62(1), 17–21. https://doi.org/10.1501/Vetfak_0000002652
Kannan, T. R., & Baseman, J. B. (2006). ADP-ribosylating and vacuolating cytotoxin of Mycoplasma pneumoniae represents unique virulence determinant among bacterial pathogens. Proceedings of the National Academy of Sciences of the USA, 103(17), 6724–6729. https://doi.org/10.1073/pnas.0510644103
Kavanagh, F., Hervey, A., & Robbins, W. J. (1951). Antibiotic substances from Basidiomycetes. VIII. Pleurotus multilus [sic] (Fr.) Sacc. and Pleurotus passeckerianus Pilat. Proceedings of the National Academy of Sciences of the USA, 37(9), 570–574. https://doi.org/10.1073/pnas.37.9.570
Klieneberger, E. (1935). The natural occurrence of pleuropneumonia-like organisms in apparent symbiosis with Streptobacillus moniliformis and other bacteria. Journal of Pathology and Bacteriology, 40(1), 93–105. https://doi.org/10.1002/path.1700400108
Linchevski, I., Klement, E., & Nir-Paz, R. (2009). Mycoplasma pneumoniae vaccine protective efficacy and adverse reactions: Systematic review and meta-analysis. Vaccine, 27(18), 2437–2446. https://doi.org/10.1016/j.vaccine.2009.01.135
Loomes, L. M., Uemura, K., Childs, R. A., Paulson, J. C., Rogers, G. N., Scudder, P. R., Michalski, J.-C., Hounsell, E. F., Taylor-Robinson, D., & Feizi, T. (1984). Erythrocyte receptors for Mycoplasma pneumoniae are sialylated oligosaccharides of Ii antigen type. Nature, 307(5951), 560–563. https://doi.org/10.1038/307560a0
Machalek, D. A., Tao, Y., Shilling, H., Jensen, J. S., Unemo, M., Murray, G., Chow, E. P. F., Low, N., Garland, S. M., Vodstrcil, L. A., Fairley, C. K., Hocking, J. S., Zhang, L., & Bradshaw, C. S. (2020). Prevalence of mutations associated with resistance to macrolides and fluoroquinolones in Mycoplasma genitalium: A systematic review and meta-analysis. The Lancet Infectious Diseases, 20(11), 1302–1314. https://doi.org/10.1016/S1473-3099(20)30154-7
Marmion, B. P., & Goodburn, G. M. (1961). Effect of an organic gold salt on Eaton’s primary atypical pneumonia agent and other observations. Nature, 189(4760), 247–248. https://doi.org/10.1038/189247a0
Meng, Y., Huo, J., Lu, W., Wang, X., Zhang, J., & Wang, W. (2013). Modulation of P1 and EGF expression by baicalin. International Journal of Molecular Sciences, 14(1), 146–157. https://doi.org/10.3390/ijms14010146
Meyer Sauteur, P. M., & Beeton, M. L. (2024). Mycoplasma pneumoniae: Delayed re-emergence after COVID-19 pandemic restrictions. The Lancet Microbe, 5(2), e100–e101. https://doi.org/10.1016/S2666-5247(23)00344-0
Mühlradt, P. F., Kiess, M., Meyer, H., Süssmuth, R., & Jung, G. (1997). Isolation, structure elucidation, and synthesis of a macrophage stimulatory lipopeptide from Mycoplasma fermentans acting at picomolar concentration. Journal of Experimental Medicine, 185(11), 1951–1958. https://doi.org/10.1084/jem.185.11.1951
Nocard, E., & Roux, E., przy współpracy Borrel, A., Salimbeni, A. T., & Dujardin-Beaumetz, E. (1898). Le microbe de la péripneumonie. Annales de l’Institut Pasteur, 12, 240–262.
Nowak, J. (1929). Morphologie, nature et cycle évolutif du microbe de la péripneumonie des bovidés. Annales de l’Institut Pasteur, 43, 1330–1352.
Różański, H. (2013). Fitoncydy w zwalczaniu mykoplazmozy drobiu. Hodowca Drobiu, (12).
Sleha, R., Mosio, P., Vydrzalova, M., Jantovska, A., Bostikova, V., & Mazurova, J. (2014). In vitro antimicrobial activities of cinnamon bark oil, anethole, carvacrol, eugenol and guaiazulene against Mycoplasma hominis clinical isolates. Biomedical Papers of the Medical Faculty of the University Palacky, Olomouc, 158(2), 208–211. https://doi.org/10.5507/bp.2012.083
Smith, C. B., Friedewald, W. T., & Chanock, R. M. (1967). Inactivated Mycoplasma pneumoniae vaccine: Evaluation in volunteers. JAMA, 199(6), 353–358.
Somerson, N. L., Taylor-Robinson, D., & Chanock, R. M. (1963). Hemolysin production as an aid in the identification and quantitation of Eaton agent (Mycoplasma pneumoniae). American Journal of Hygiene, 77, 122–128. https://doi.org/10.1093/oxfordjournals.aje.a120290
Subspecialty Group of Respiratory, the Society of Pediatrics, Chinese Medical Association, China National Clinical Research Center of Respiratory Diseases, & Editorial Board, Chinese Journal of Pediatrics. (2025). Evidence-based guideline for the diagnosis and treatment of Mycoplasma pneumoniae pneumonia in children (2023). Pediatric Investigation, 9(1), 1–11. https://doi.org/10.1002/ped4.12469
Tully, J. G., Taylor-Robinson, D., Cole, R. M., & Rose, D. L. (1981). A newly discovered mycoplasma in the human urogenital tract. The Lancet, 1(8233), 1288–1291. https://doi.org/10.1016/S0140-6736(81)92461-2
Tully, J. G., Taylor-Robinson, D., Rose, D. L., Cole, R. M., & Bové, J. M. (1983). Mycoplasma genitalium, a new species from the human urogenital tract. International Journal of Systematic Bacteriology, 33(2), 387–396. https://doi.org/10.1099/00207713-33-2-387
Uphoff, C. C., & Drexler, H. G. (2002). Comparative PCR analysis for detection of mycoplasma infections in continuous cell lines. In Vitro Cellular & Developmental Biology – Animal, 38(2), 79–85. https://doi.org/10.1290/1071-2690(2002)038<0079:CPAFDO>2.0.CO;2
Waites, K. B., Xiao, L., Liu, Y., Balish, M. F., & Atkinson, T. P. (2017). Mycoplasma pneumoniae from the respiratory tract and beyond. Clinical Microbiology Reviews, 30(3), 747–809. https://doi.org/10.1128/CMR.00114-16
Wang, C., He, X., Yang, L., Qian, Y., Li, X., Duan, X., Ma, H., Zhang, Z., Wang, X., & Tan, C. (2026). In vitro and in vivo antimicrobial activity of protoberberine alkaloids as novel therapeutic candidates against Mycoplasma hyopneumoniae. Microbiology Spectrum, 14(3), e0325425. https://doi.org/10.1128/spectrum.03254-25
Wang, J., Liang, K., Chen, L., Su, X., Liao, D., Yu, J., & He, J. (2023). Unveiling the stealthy tactics: Mycoplasma’s immune evasion strategies. Frontiers in Cellular and Infection Microbiology, 13, 1247182. https://doi.org/10.3389/fcimb.2023.1247182
Workowski, K. A., Bachmann, L. H., Chan, P. A., Johnston, C. M., Muzny, C. A., Park, I., Reno, H., Zenilman, J. M., & Bolan, G. A. (2021). Sexually transmitted infections treatment guidelines, 2021. MMWR Recommendations and Reports, 70(4), 1–187. https://doi.org/10.15585/mmwr.rr7004a1
Yamao, F., Muto, A., Kawauchi, Y., Iwami, M., Iwagami, S., Azumi, Y., & Osawa, S. (1985). UGA is read as tryptophan in Mycoplasma capricolum. Proceedings of the National Academy of Sciences of the USA, 82(8), 2306–2309. https://doi.org/10.1073/pnas.82.8.2306


Najnowsze komentarze